


Monographie de produit - Vitamin A (100,000 IU) and Vitamin E (20 IU) Oral Liquid Preparation
RENSEIGNEMENTS SOMMAIRES SUR LE PRODUIT
RENSEIGNEMENTS DE BASE
La vitamine A est un nutriment essentiel qui ne peut être synthétisé par le corps humain. Il faut donc la puiser dans l’alimentation. La vitamine A est nécessaire au fonctionnement normal du système visuel, et au maintien de la fonction cellulaire pour la croissance, l’intégrité épithéliale, la production de globules rouges, la fonction immunitaire et la reproduction (FAO, 2001; Drug Bank, 2013; EFSA, 2015). La carence en vitamine A est fréquente dans les pays en voie de développement. Selon un rapport de 2009 de l’Organisation mondiale de la Santé (OMS) (Prévalence mondiale de la carence en vitamine A, OMS, 2009), environ 190 millions d’enfants de moins de 5 ans manquent de vitamine A (concentration sérique en rétinol < 0,70 μmol/l), ce qui représente environ 33 % des enfants de moins de 5 ans au sein des populations à risque de carence en vitamine A (Imdad et al., 2010; NIH ODS, 2016). Une carence en vitamine A prolongée ou grave peut entraîner des troubles courants au sein des populations à risque de carence, par exemple la xérophtalmie, principale cause de cécité évitable chez les enfants et indicateur capital de carence en vitamine A (Imdad et al., 2010; NIH ODS, 2016). Bien que la cécité nocturne et les taches de Bitot soient considérées comme des stades peu sévères de la maladie oculaire, elles sont toutes deux des signes de carence en vitamine A systémique moyenne ou grave. L’Afrique et l’Asie du Sud-Est comptent la plus forte proportion d’enfants de moins de 5 ans atteints de carence en vitamine A biochimique (Imdad et al., 2010). La supplémentation en vitamine A par voie orale et l’enrichissement des aliments sont les méthodes les plus directes pour fournir de la vitamine A aux gens dont l’alimentation est carencée (Imdad et al., 2010). Le schéma de supplémentation en vitamine A suggéré est de 100 000 UI de vitamine A en dose unique pour les nourrissons de 6 à 11 mois et de 200 000 UI de vitamine A pour les enfants de 12 à 59 mois (administration tous les 4-6 mois) dans les régions où la carence en vitamine A constitue un problème de santé publique (directive de l’OMS, 2011).
| Voie d’administration | Forme pharmaceutique / puissance | Ingrédients non médicinaux importants sur le plan clinique |
| Orale | Gélules de vitamine A 100 000 UI (palmitate de rétinyle tout-trans) et de vitamine E 20 UI (acétate de tout-rac-alpha-tocophérol) | Aucun. Pour la liste complète des ingrédients, voir la section FORMES PHARMACEUTIQUES, COMPOSITION ET CONDITIONNEMENT. |
INDICATIONS ET UTILISATION CLINIQUE
La préparation buvable de vitamine A (100 000 UI) et de vitamine E (20 UI) [vitamine A (palmitate de rétinyle tout-trans) et vitamine E (acétate de tout-rac-alpha-tocophérol)] est indiquée pour la prévention des séquelles de la carence en vitamine A, comme la cécité nocturne, les taches de Bitot et la xérophtalmie, chez les enfants âgés entre 6 et 11 mois dans les régions où la carence en vitamine A est répandue.
Pédiatrie (enfants de 6 à 11 mois) :
La préparation buvable de vitamine A (100 000 UI) et de vitamine E (20 UI) est indiquée pour les enfants âgés entre 6 et 11 mois.
CONTRE-INDICATIONS
- Hypervitaminose A (Bauernfeind, 1980).
- La supplémentation en vitamine A devrait être évitée chez les nourrissons et les enfants des régions où la carence en vitamine A ne constitue pas un problème de santé publique.
- La supplémentation en vitamine A à fortes doses est contre-indiquée chez les femmes enceintes ou qui peuvent devenir enceintes (Buss et al., 1994).
- Nourrissons de moins de 6 mois, y compris les nouveau-nés prématurés (directive de l’OMS, 2011).
- Hypersensibilité à la vitamine A, à la vitamine E ou à tout ingrédient contenu dans la formule. Pour la liste complète des ingrédients, voir la section FORMES PHARMACEUTIQUES, COMPOSITION ET CONDITIONNEMENT.
AVERTISSEMENTS ET PRÉCAUTIONS
Généralités
Protéger de l’humidité, de la lumière et des températures supérieures à 30 °C (DCIP 2.3.P.8.1 Stabilité et conclusions).
Les suppléments de vitamine A à fortes doses devraient seulement être administrés aux enfants sous supervision médicale, dans les régions où la carence en vitamine A est confirmée.
Il existe une interaction potentielle entre la supplémentation en vitamine A et la vaccination; on ne devrait jamais donner à un enfant une forte dose de vitamine A en même temps qu’un vaccin, en particulier le vaccin contre la rougeole ou le vaccin contre la diphtérie, le tétanos et la coqueluche (DTP) (voir la section Interactions médicamenteuses).
La carence vitaminique en vitamine A seulement est rare. Une carence alimentaire entraîne habituellement un manque de vitamines ou d’oligo-éléments multiples.
Presque toute la vitamine A de l’organisme est emmagasinée dans le foie et est normalement mobilisée et libérée dans le plasma sous forme de rétinol. Bien que le taux de rétinol plasmatique soit utile pour évaluer une carence en vitamine A (c.-à-d. une concentration sérique en rétinol de 0,70 μmol/l ou moins, directive de l’OMS, 2011), la concentration sérique en rétinol ne reflète pas la réserve de vitamine A dans le foie (NIH ODS, 2016).
Système endocrinien et métabolisme
L’effet à long terme d’une exposition à de fortes doses de vitamine A sur les os (résorption osseuse accrue et formation osseuse réduite) n’a pas été étudié. La prudence est de mise pour éviter l’exposition involontaire à de fortes doses multiples sur une courte période (SCF, 2002).
Ophtalmologie
La supplémentation en vitamine A à fortes doses peut ne pas empêcher tous les cas de xérophtalmie (Tapan B, Donaldson D. Intestinal absorption in health and disease: micronutrients. Best Practice and Research Clinical Gastroenterology. 2003; 17(6): 957-979. West and Sommer, 1987).
Système respiratoire
Les suppléments de vitamine A devraient être administrés avec prudence aux enfants atteints d’infections respiratoires (EFSA, 2015, McLaren and Kraemer, 2012).
Populations particulières
Femmes enceintes : La supplémentation en vitamine A à fortes doses est contre-indiquée chez les femmes enceintes ou qui peuvent devenir enceintes en raison de la tératogénicité connue de la vitamine A (Buss et al., 1994; EFSA, 2015) (voir CONTRE-INDICATIONS et TOXICOLOGIE).
Parmi les bébés dont la mère prenait plus de 10 000 UI de vitamine A préformée par jour sous forme de suppléments, on estime qu’environ un nourrisson sur cinquante-sept présentait une malformation attribuable à la vitamine A. Cette malformation affectait les structures craniofaciales, cardiaques et thymiques ainsi que celles du système nerveux central (Rothman et al., 1995).
Femmes qui allaitent : La vitamine A est excrétée dans le lait maternel; contactez votre professionnel de la santé si vous allaitez (EFSA, 2015).
Pédiatrie (enfants de 6 à 11 mois) :
Ce produit est destiné aux enfants de 6 à 11 mois seulement (directive de l’OMS, 2011).
Voir la monographie de la préparation buvable de vitamine A (200 000 UI) et de vitamine E (40 UI) en gélules pour les enfants âgés entre 12 et 59 mois.
La supplémentation en vitamine A est contre-indiquée chez les nourrissons de moins de 6 mois (voir CONTRE-INDICATIONS).
EFFETS INDÉSIRABLES
Aperçu des effets indésirables du médicament
Le tableau clinique de la toxicité de la vitamine A chez les nourrissons et les jeunes enfants varie largement. Les signes et symptômes les plus reconnus comprennent les anomalies squelettiques, la douleur osseuse, la pression intracrânienne accrue, la desquamation, les ongles cassants, les fissures buccales, l’alopécie, la fièvre, les maux de tête, la léthargie, l’irritabilité, la perte de poids, les vomissements et l’hépatomégalie (Bush and Dahmas, 1984; IOM, 2001).
Chez la plupart des enfants âgés entre 6 et 59 mois, une dose de 100 000 à 200 000 UI de vitamine A est bien tolérée, quoique des effets secondaires comme les maux de tête, la nausée ou des vomissements, et la diarrhée aient été rapportés chez 3 à 7 % de ces enfants. Cependant, ces symptômes sont temporaires, la grande majorité se manifestant et disparaissant dans les 24 heures suivant l’administration (Bauernfeind, 1980; directive de l’OMS, 2011).
Les effets indésirables qui surviennent dans les 48 heures suivant la réception d’un supplément de vitamine A sont habituellement légers et temporaires et n’ont pas de conséquence à long terme. Ces effets indésirables peuvent comprendre un bombement de la fontanelle ouverte chez les jeunes nourrissons ainsi que la nausée et(ou) des vomissements chez les enfants plus vieux dont la fontanelle est fermée (directive de l’OMS, 2011).
Aucun décès connu n’a été attribué uniquement à la toxicité de la vitamine A en raison d’une surconsommation (Bauernfeind, 1980; directive de l’OMS, 2011).
Effets indésirables du médicament observés au cours des essais cliniques
Puisque les essais cliniques sont menés dans des conditions très particulières, le taux d’effets indésirables qui sont observés peut ne pas refléter le taux observé en pratique et ne doit pas être comparé au taux observé dans le cadre des essais cliniques portant sur un autre médicament. Les renseignements sur les effets indésirables d’un médicament qui sont tirés d'essais cliniques sont utiles pour la détermination des événements indésirables liés aux médicaments et pour l’approximation des taux.
Effets secondaires d’une forte dose unique périodique :
L’innocuité et l’efficacité d’un supplément de 100 000 à 200 000 UI de vitamine A ont été évaluées dans le cadre d’un examen systématique (Imdad et al., 2010; directive de l’OMS, 2011). Trois essais (Sinha, 1976; Florentino, 1990; Arya, 2000) ont fait état d’un risque accru de vomissement au cours des quarante-huit heures suivant la prise du supplément. Au cours de ces essais, on a constaté un risque de vomissement considérablement supérieur (de 2 à 6 %) chez les participants exposés à une forte dose de vitamine A par rapport à ceux qui n’y ont pas été exposés (risque relatif (RR) de 2,75; intervalle de confiance (IC) à 95 % de 1,81-4,19).
Trois essais (Stabell, 1995; Bahl, 1999; Arya, 2000; Imdad et al., 2010) ont rapporté des cas de bombement de la fontanelle, mais les données d’un essai seulement ont pu être analysées. La hausse sensible du risque de bombement de la fontanelle a été signalée chez les nouveau-nés (un nourrisson) exposés à une supplémentation en vitamine A à fortes doses par rapport à ceux qui n’y ont pas été exposés (RR de 5,00; IC à 95 % de 0,24-103,72). La plupart des études visaient des enfants de plus de 1 an et n’ont pas évalué cet effet secondaire.
INTERACTIONS MÉDICAMENTEUSES
Aperçu
Bien qu’on ne connaisse actuellement aucune interaction médicament-aliment, médicament-herbe médicinale, médicament-épreuves de laboratoire ou médicament-mode de vie, il peut exister des interactions médicament-nutriment ou médicament-médicament. Les interactions médicamenteuses chez les enfants des populations visées sont présentées.
Interactions médicament-médicament
Vaccin diphtérie-tétanos-coqueluche (DTP) — Il existe une interaction potentielle entre la supplémentation en vitamine A à fortes doses et la vaccination; on ne devrait jamais donner à un enfant une forte dose de vitamine A en même temps qu’un vaccin, en particulier le vaccin contre la rougeole ou le vaccin contre la diphtérie, le tétanos et la coqueluche (DTP) (voir AVERTISSEMENTS ET PRÉCAUTIONS).
Vaccin contre la rougeole : Lorsqu’un supplément de vitamine A est administré conjointement avec le vaccin contre la rougeole, des cas prouvés d’effets secondaires indésirables survenus dans les 24 heures suivant l’administration, dont des vomissements, des selles molles, la fièvre et l’irritabilité, sont documentés dans la littérature (Imdad et al., 2010) (voir AVERTISSEMENTS ET PRÉCAUTIONS).
Interactions médicament-nutriment
Calcium : L’administration de fortes doses de vitamine A pendant de longues périodes peut contribuer à la perte osseuse (EFSA, 2015; IOM, 2001).
Vitamine D : La vitamine A peut contrarier l’action de la vitamine D (EFSA, 2015).
Vitamine E : Des doses importantes de vitamine E peuvent interférer avec l’absorption de la vitamine A (IOM, 2001).
Zinc : Une carence en zinc peut gêner plusieurs mécanismes du métabolisme de la vitamine A, dont l’absorption, le transport et l’utilisation (IOM, 2001).
Il ne faut pas exclure la possibilité d’interaction entre la vitamine A et d’autres nutriments; l’effet d’une telle interaction n’a pas été pleinement caractérisé.
POSOLOGIE ET ADMINISTRATION
Dose recommandée et modification posologique
Enfants de 6 à 11 mois :
La dose recommandée est une (1) dose unique de préparation buvable de vitamine A
(100 000 UI) et de vitamine E (20 UI) administrée aux enfants de 6 à 11 mois par un professionnel de la santé dans les régions où la carence en vitamine A constitue un problème de santé publique conformément à la directive de l’OMS (directive de l’OMS, 2011).
(Pour les enfants de 12 à 59 mois, voir la monographie du produit vitamine A (200 000 UI) et vitamine E (40 UI), qui est administré tous les 4-6 mois dans les régions où la carence en vitamine A constitue un problème de santé publique.)
Pour déterminer si la carence en vitamine A est un problème de santé publique, il faut estimer la prévalence de la carence dans la population considérée en utilisant des indicateurs biochimiques et cliniques spécifiques du statut vitaminique A. La supplémentation en vitamine A est typique dans les régions où le taux de prévalence de la cécité nocturne est de 1 % ou plus chez les enfants de 24 à 59 mois ou encore dans les régions où le taux de prévalence de la carence en vitamine A (concentration sérique en rétinol de 0,70 μmol/l ou moins) est de 20 % ou plus chez les nourrissons et les enfants de 6 à 59 mois (Imdad et al., 2010; NIH ODS, 2016).
Dose oubliée
Une seule dose devrait être administrée aux enfants de 6 à 11 mois.
Administration
La préparation de vitamine A (100 000 UI) et de vitamine E (20 UI) est présentée dans une gélule et est administrée sous forme liquide par voie orale à partir de la gélule de la façon suivante :
- Couper l’extrémité de la gélule.
- Presser la gélule pour en extraire le contenu goutte à goutte dans la bouche de l’enfant, jusqu’à ce que la gélule soit vide.
- Ne pas mettre la gélule dans la bouche de l’enfant, et veiller à ce qu’il ne l’avale pas.
SURDOSAGE
L’administration d’une quantité excessive ou d’une surdose de suppléments de vitamine A peut causer la toxicité ou hypervitaminose A. La toxicité est possible si plus d’une dose est administrée par erreur (directive de l’OMS, 2011). La quantité requise pour causer la toxicité variera selon les individus, leur âge et leur fonction hépatique (Bauernfeind, 1980; directive de l’OMS, 2011).
Symptômes du surdosage
Les signes et symptômes de la toxicité aiguë d’une dose unique ou de doses multiples de vitamine A peuvent être retardés de 8-24 heures et comprennent ce qui suit : nausée, vomissements, diarrhée, changements d’humeur (irritabilité, somnolence, léthargie), pression intracrânienne accrue (maux de tête, bombement de la fontanelle, diplopie, œdème papillaire), changements cutanés (érythème, prurit, desquamation). Une desquamation autour de la bouche peut survenir un ou plusieurs jours après l’ingestion et peut s’étendre au reste du corps. Une augmentation des concentrations plasmatiques de la vitamine A peut survenir mais ne signifie pas nécessairement qu’il y a toxicité (Miller and Hayes, 1982; Bendich and Langseth, 1989; Hathcock et al., 1990; CPS, 2016; Parfitt, 1999; OMS, événements indésirables, 2016).
L’effet tératogène d’un apport excessif en vitamine A ou en rétinoïdes sur les animaux et les humains est bien documenté (Hathcock et al., 1990) (voir TOXICOLOGIE).
Traitement de la surdose
En cas de toxicité de la vitamine A, un traitement symptomatique et de soutien doit être prodigué. Pour un surdosage aigu, utiliser du charbon activé pour la décontamination gastro-intestinale. On peut réduire la pression intracrânienne en administrant de la dexaméthasone ou du mannitol par voie i.v. Chez les enfants non traités, une augmentation de la tension intracrânienne peut durer 4 semaines après l’abandon de la vitamine A (Combs, Gerald F. The Vitamins. Amsterdam : Elsevier/Academic Press, 2012. Imprimé. CPS, 2016).
Pour traiter une surdose présumée, communiquer avec le centre antipoison régional.
MODE D’ACTION ET PHARMACOLOGIE CLINIQUE
Le palmitate de rétinyle est un phényle analogue de source naturelle du rétinol (vitamine A). Le terme vitamine A s’applique au rétinol tout-trans (appelé également rétinol), à la famille de molécules de source naturelle associées à l’activité biologique du rétinol (rétinoïdes liposolubles comme le rétinal, l’acide rétinoïque et les esters du rétinol) ainsi qu’au groupe de caroténoïdes provitamine A (p. ex. bêta-carotène, alpha-carotène et bêta-cryptoxanthine), qui sont des précurseurs alimentaires du rétinol (EFSA, 2015).
L’alimentation fournit deux formes de vitamine A :
- La vitamine A préformée (rétinol et esters du rétinol) se trouve dans les aliments d’origine animale, dont les produits laitiers, le poisson et la viande (surtout le foie) (Higdon, 2000; NIH ODS, 2016). Le rétinol libre n’est habituellement pas présent dans les aliments. Le palmitate de rétinyle, précurseur et forme de réserve du rétinol, se trouve dans les aliments dérivés d’animaux (Nutri-Facts, 2015).
- Les caroténoïdes provitamine A se trouvent dans les fruits et les légumes. Le bêta-carotène est le plus important des caroténoïdes provitamine A. On compte aussi l’alpha-carotène et le bêta-cryptoxanthine. Ces pigments végétaux sont transformés en vitamine A par l’organisme (Higdon, 2000; NIH ODS, 2016).
La vitamine A préformée et la provitamine A doivent être métabolisées à l’intérieur de la cellule en rétinal et en acide rétinoïque, les formes actives de la vitamine A, afin de soutenir les fonctions biologiques importantes de la vitamine. Les esters du rétinol et les caroténoïdes provitamine A sont transformés en rétinol, qui est oxydé pour former du rétinal, puis de l’acide rétinoïque. Presque toute la vitamine A de l’organisme est emmagasinée dans le foie sous forme d’esters du rétinol (NIH ODS, 2016).
Mode d’action
La vitamine A est essentielle à la croissance, au développement des os, à la vision, à la reproduction et au maintien de l’intégrité des muqueuses et des surfaces épithéliales (IOM, 2001; Ross, 2010; NIH ODS, 2016). Les composés de la vitamine A sont des molécules liposolubles emmagasinées surtout dans le foie sous forme d’esters du rétinol (p. ex. palmitate de rétinyle) (Higdon, 2000).
Les esters du rétinol sont hydrolysés en rétinol tout-trans, qui se fixe aux protéines de liaison du rétinol (RBP) puis est libéré dans le sang. Le complexe rétinol tout-trans/RBP se lie à la protéine de transport transthyrétine, qui distribue le rétinol tout-trans aux tissus périphériques (Higdon, 2000).
La rétine du système visuel contient deux principaux types de cellules photoréceptrices sensibles à la lumière : des bâtonnets et des cônes. Le rétinol circule jusqu’à la rétine et s’accumule dans les cellules de l’épithélium pigmentaire de la rétine. De là, le rétinol subit une estérification pour former l’ester de rétinol, qui peut être emmagasiné (Higdon, 2000). Au besoin, les esters du rétinol sont hydrolysés et isomérisés en 11-cis-rétinol, qui peut à son tour être oxydé en 11-cis-rétinal. Le 11-cis-rétinal peut se rendre aux bâtonnets rétiniens, où il se lie à la protéine opsine et forme le pigment visuel rhodopsine (Higdon, 2000; EFSA, 2015). L’absorption de lumière catalyse la photo-isomérisation du 11-cis-rétinal en rétinal tout-trans dans des milliers de bâtonnets et déclenche un signal aux neurones associées au cortex visuel du cerveau, responsable de la vision. Pour que la vision continue, le 11-cis-rétinal doit être régénéré (IOM, 2001; EFSA, 2015). La régénération du 11-cis-rétinal exige la réduction du rétinol tout-trans en rétinol, le transport du rétinol des bâtonnets rétiniens jusqu’aux cellules de l’épithélium pigmentaire et l’estérification du rétinol tout-trans, qui permet le stockage local des esters du rétinol (IOM, 2001). Au besoin, les esters du rétinol sont hydrolysés et isomérisés en 11-cis-rétinol, qui peut à son tour être oxydé en 11-cis-rétinal puis retransporté vers les cellules photoréceptrices pour la recombinaison avec l’opsine afin de commencer un autre cycle photo (Higdon, 2000; IOM, 2001).
L’altération de la rhodopsine par une cascade de réactions photochimiques permet de voir les objets sous un faible éclairage. La vitesse à laquelle la rhodopsine est régénérée dépend de la disponibilité du rétinol. La cécité nocturne est habituellement indicatrice d’une réserve de rétinol disponible insuffisante ou d’une resynthèse trop lente du 11-cis-rétinal (Drug Bank, 2013), mais elle peut aussi être attribuable à une carence en d’autres nutriments essentiels à la régénération de la rhodopsine, par exemple les protéines et le zinc, ou être causée par des maladies héréditaires comme la rétinite pigmentaire.
On rapporte que la vitamine E pourrait accroître l’absorption de la vitamine A. Cependant, le rôle exact de la vitamine E n’est pas caractérisé.
Pharmacodynamique
Les cellules de l’intestin grêle absorbent le rétinol selon un processus de transport qui fait intervenir la protéine CRBPII. Une fois absorbé, le rétinol subit un processus de réestérification et est contenu dans un chylomicron, qui peut être sécrété dans le canal lymphatique. L’ester du rétinal liposoluble est alors stocké dans les cellules hépatiques grâce à un processus induit par des récepteurs qui fait intervenir les chylomicrons pour l’utilisation ultérieure.
La vitamine A est un cofacteur dans diverses réactions biochimiques, entre autres la synthèse des mucopolysaccharides et du cholestérol, ainsi que le métabolisme des hydroxystéroïdes. La vitamine A joue un rôle vital dans la vision, la différenciation des cellules épithéliales, la croissance, la reproduction, la formation de modèles durant l’embryogénèse, le développement des os, l’hématopoïèse et le développement du cerveau. Elle est aussi importante pour le maintien du bon fonctionnement du système immunitaire (Drug Bank, 2013).
Pharmacocinétique
Absorption :
La vitamine A est une vitamine liposoluble facilement absorbée à partir du tractus gastro-intestinal normal. L’absorption intestinale de la vitamine A préformée se fait après que les esters du rétinol ont été transformés dans la lumière de l’intestin grêle (IOM, 2001). On atteint des concentrations plasmatiques maximales dans un délai de 3 à 5 heures. (Combs, Gerald F. The Vitamins. Amsterdam : Elsevier/Academic Press, 2012.Imprimé. CP, 2016). Entre 70 et 90 % de la vitamine A provenant de l’alimentation est absorbée dans l’intestin (IOM, 2001; EFSA, 2015). L’efficacité de l’absorption de la vitamine A demeure élevée (60-80 %) à mesure que l’apport continue à augmenter. Plus de 90 % des réserves de rétinol de l’organisme sont consommés sous forme d’esters du rétinol qu’on retrouve plus tard dans la partie lipide du chylomicron. La vitamine A est absorbée très rapidement, l’absorption maximale se faisant de deux à six heures après la digestion. Un faible pourcentage de rétinoïde alimentaire est transformé en acide rétinoïque dans la cellule intestinale (IOM, 2001). L’intestin synthétise activement le retinoyl β-glucuronide, qui est hydrolysé en acide rétinoïque par le β-glucuronide (IOM, 2001). Pour une absorption optimale des rétinoïdes, il faut consommer des matières grasses avec les rétinoïdes ingérés. Ce gras est nécessaire pour faciliter le passage des rétinoïdes dans les entérocytes à partir de la lumière de l’intestin parce que les esters du rétinol alimentaires ne pénètrent pas la muqueuse et doivent d’abord être hydrolysés pour produire du rétinol libre (D’Ambrosio et al., 2011; EFSA, 2015). Une charge lipidique est également requise pour permettre une formation optimale des chylomicrons puisque les rétinoïdes, comme les autres lipides alimentaires, pénètrent dans l’organisme sous forme de composé des chylomicrons naissants riches en triglycérides (D’Ambrosio et al., 2011). Dans la lumière de l’intestin, la vitamine est incorporée à une micelle et absorbée à travers la bordure en brosse, dans les entérocytes. Dans l’entérocyte, les précurseurs de la vitamine A (caroténoïdes) sont transformés en formes actives de la vitamine. Les nouveaux produits ainsi formés et les précurseurs supplémentaires sont ensuite réunis dans des chylomicrons naissants et préparés pour le transport dans l’organisme par sécrétion dans le système lymphatique, qui les distribuera dans le courant sanguin (EFSA, 2015).
L’absorption peut être entravée chez les patients qui n’absorbent pas bien les graisses, ont un faible apport protéique ou souffrent de maladie hépatique ou pancréatique. Tout trouble qui gêne l’émulsification luminale des graisses, l’hydrolyse des graisses ou la formation de micelles risque de réduire simultanément l’absorption de la vitamine A (Ross, 2010). De plus, la malaria ou une fièvre récente peut nuire à l’absorption et à la rétention de la vitamine A. L’absorption de la vitamine A peut être affectée en présence d’infections gastro-intestinales courantes causées par la giardia, l’ascaris, la salmonelle ou d’autres organismes entéropathogènes. En outre, on peut s’attendre à ce que des infections respiratoires courantes réduisent l’absorption d’une forte dose de vitamine A (c.-à-d. une baisse de l’absorption d’une dose physiologique de vitamine A de près de 100 % à environ 75 %) (McLaren and Kraemer, 2012).
Distribution :
Au cours des étapes successives du métabolisme, le rétinol absorbé est retransformé en esters du rétinol et incorporé aux chylomicrons dans les cellules intestinales. Les chylomicrons sont ensuite libérés dans les vaisseaux lymphatiques afin d’être transportés dans le canal thoracique pour la circulation générale. Lorsqu’ils circulent, la majorité des esters du rétinol sont évacués des chylomicrons, hydrolysés puis repris par les cellules hépatiques. Certains esters du rétinol peuvent être absorbés directement par les tissus périphériques, quoique l’apoprotéine E soit requise pour la capture des résidus de chylomicrons par le foie. Dans le foie, ils peuvent être réestérifiés et stockés dans les adipocytes sous forme de rétinol. L’hydrolase ester du rétinol catalyse l’hydrolyse des esters du rétinol en rétinol après l’endocytose (IOM, 2001). Au besoin (p. ex. lorsque les taux de rétinol sont faibles), les réserves hépatiques de rétinol se combinent à la protéine de liaison du rétinol (RBP) pour former un complexe RBP-rétinol (holo-RBP). L’holo-RBP est sécrété dans le sang et s’associe à la protéine de transport transthyrétine pour former un complexe trimoléculaire avec le rétinol (IOM, 2001). Ce complexe plus gros circule et transporte le rétinol essentiel aux tissus en s’associant aux membranes et aux protéines de liaison des tissus qui ont besoin de rétinol. Le complexe transthyrétine-RBP-rétinol circule dans le sang, fournissant le rétinol lipophile aux tissus; sa taille importante empêche la filtration par les reins. Un apport réduit en énergie, en protéines ou en certains micronutriments peut limiter la synthèse hépatique des protéines qui interviennent dans la mobilisation et le transport de la vitamine A. La vitamine A est également emmagasinée dans les reins, les poumons, les glandes surrénales, les rétines et le gras intrapéritonéal en moins grandes quantités que le palmitate de rétinyle (Tapan and Donaldson, 2003). Une fonction rénale déficiente ou une fièvre associée à une infection (p. ex. une infection respiratoire ou la diarrhée) peuvent accroître la déperdition urinaire de la vitamine A. Chez un adulte, les stocks corporels de vitamine A sont normalement suffisants pour couvrir les besoins de l’organisme pendant plusieurs mois, jusqu’à un maximum de deux ans. La vitamine A ne traverse pas facilement le placenta et est excrétée dans le lait maternel (Combs, 2012).
Métabolisme :
Le métabolisme des rétinoïdes dans le tractus gastro-intestinal se produit principalement dans la partie proximale de l’intestin grêle et comporte des étapes qui ont lieu dans la lumière et dans l’entérocyte (D’Ambrosio et al., 2011). Les processus digestifs clés qui se produisent dans la lumière de l’intestin comprennent la libération des rétinoïdes alimentaires contenus dans la matrice des aliments et leur émulsification à l’aide d’acides gras alimentaires et d’acides biliaires (D’Ambrosio et al., 2011; EFSA, 2015). Le mécanisme selon lequel le rétinol dans le sang est capté par les cellules périphériques n’a pas été établi de façon concluante (IOM, 2001). L’émulsification avec les acides gras libres et les sels biliaires est nécessaire à la formation de micelles, laquelle est essentielle pour faciliter l’absorption des rétinoïdes hautement insolubles par les entérocytes à partir de la lumière (D’Ambrosio et al., 2011; Ross, 2010). Le rétinol alimentaire est absorbé directement de la lumière aux entérocytes, mais les esters du rétinol alimentaires doivent d’abord subir une hydrolyse enzymatique dans la lumière ou à la bordure en brosse des entérocytes (D’Ambrosio et al., 2011). Le rétinol est emprisonné dans les cellules par la réestérification ou la fixation à des protéines de liaison intracellulaire spécifiques. Les esters du rétinol et d’autres lipides sont incorporés aux chylomicrons, qui sont sécrétés dans le système lymphatique (D’Ambrosio et al., 2011). Les chylomicrons sont métabolisés par la lipase lipoprotéinique qui libère leurs triglycérides sous forme d’acides gras dans les tissus adipeux et musculaires, puis les chylomicrons restants transportent le reste des lipides et la majeure partie des esters du rétinol jusqu’au foie (Ross, 2010). Le rétinol qui n’est pas immédiatement libéré dans la circulation par le foie est réestérifié et stocké dans les cellules de Kupffer (Ito) contenant des lipides jusqu’à ce qu’il soit nécessaire pour maintenir des concentrations normales de rétinol dans le sang (IOM, 2001).
Excrétion :
L’holo-RBP est filtré dans le glomérule mais est récupéré du tubule rénal puis est recyclé. Seule une fraction relativement faible du rétinol et de ses métabolites est excrétée dans l’urine; la plus grande partie de la vitamine A est éliminée sous forme de métabolites inactifs résultant de l’utilisation par les tissus et sous forme de conjugués de glucuronide actifs et potentiellement recyclables du rétinol dans les sécrétions biliaires (IOM, 2001; Ross, 2010). Lorsque la vitamine A dans le foie excède une concentration critique, les métabolites de vitamine A excrétés dans la bile augmentent; il semble s’agir d’un mécanisme de protection pour réduire le risque de surcharge en vitamine A (IOM, 2001). Aucun métabolite urinaire représentant précisément la concentration tissulaire ou le taux d’utilisation de la vitamine A n’a été cerné.
La majeure partie des produits biliaires sont éliminés dans les selles; cependant, 30 % (p. ex. les retinoyl β-glucuronides) sont réabsorbés dans le foie par les intestins au cours de la circulation entérohépatique. Environ 10 % de la vitamine A provenant de l’alimentation ne sont pas absorbés, 20 % sont éliminés dans les selles par la bile, 17 % sont excrétés dans l’urine, 3 % sont libérés sous forme de CO2 et 50 % sont emmagasinés dans le foie (Olson, 1994; McLaren and Kraemer, 2012).
ENTREPOSAGE ET STABILITÉ
Garder le contenant bien fermé, à l’abri de l’humidité et de la lumière, dans un endroit frais et sec. Éviter les températures supérieures à 30 °C et les taux d’humidité relative supérieurs à 65 %.
Garder dans un endroit sûr, hors de la portée et de la vue des enfants.
FORMES PHARMACEUTIQUES, COMPOSITION ET CONDITIONNEMENT
Formes pharmaceutiques
La préparation buvable de vitamine A (100 000 UI) et de vitamine E (20 UI) est offerte en gélules bleues de forme tubulaire dont l’extrémité à couper sert de tétine pour l’administration en dose unique ou à l’aide d’une cuiller graduée. Chaque gélule contient : 100 000 UI de vitamine A (palmitate de rétinyle tout-trans) et 20 UI de vitamine E (acétate de tout-rac-alpha-tocophérol). Une UI de vitamine A a une activité équivalente à 0,3 mcg de rétinol tout-trans. Chaque gélule contient de l’huile de remplissage translucide incolore ou jaune pâle.
Composition
Ingrédients médicinaux : Vitamine A (palmitate de rétinyle tout-trans) et vitamine E (acétate de tout-rac-alpha-tocophérol).
Ingrédients non médicinaux : D&C rouge no 28, éthylvanilline, AD&C bleu no 1, gélatine, glycérine, huile de soya, dioxyde de titane. Peut contenir des traces de lécithine.
Conditionnement
Les gélules de préparation buvable de vitamine A (100 000 UI) et de vitamine E (20 UI) sont présentées dans des flacons ronds 45-400 de 300 cm3 en polyéthylène haute densité (PEHD) blanc. Chaque flacon contient 500 gélules et un absorbeur d’humidité (charbon activé et gel de silice dans un sachet Tyvek® imprimé).
Conditions de stockage : Garder le contenant bien fermé, à l’abri de l’humidité et de la lumière, dans un endroit frais et sec. Éviter les températures supérieures à 30 °C et les taux d’humidité relative supérieurs à 65 %.
PARTIE II : RENSEIGNEMENTS SCIENTIFIQUES
RENSEIGNEMENTS PHARMACEUTIQUES
Substance pharmaceutique
Vitamine A :
Noms propres : Vitamine A (palmitate de rétinol), palmitate de vitamine A, palmitate de rétinyle, palmitate de rétinol, palmitate de rétinyle tout-trans, palmitate de rétinol tout-trans
Numéro CAS : 79-81-2
Nom inscrit au registre CAS : Hexadécanoate de rétinol
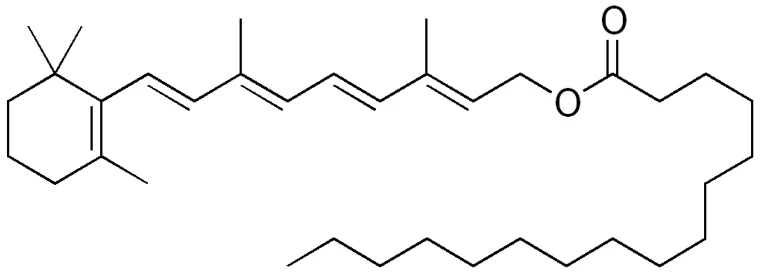
Nom chimique : [(2E,4E,6E,8E)-3,7-diméthyle-9-(2,6,6-triméthylcyclohex-1-en-1-yl)nona- 2,4,6,8-tetraen-1-yl] hexadécanoate
Formule moléculaire : C36H60O2 Masse moléculaire : 524,86 g/mol Formule développée :
| Propriétés physiochimiques : | Liquide légèrement opaque ou translucide de consistance visqueuse à semi-solide et de couleur jaune tirant sur l’orange ayant un point de fusion d’environ 28 ou 29 °C et une densité approximative de 0,90-0,95 g/ml. Insoluble dans l’eau mais soluble dans le chloroforme, l’éther et les huiles végétales, p. ex. l’huile de maïs, et légèrement soluble dans l’alcool. Les solides et les solutions sont sensibles à l’air, à la lumière et à la chaleur. Les solutions sont relativement stables dans l’obscurité, à -20 °C dans un solvant organique sans peroxyde ni acide (les esters du rétinol sont plus stables que le rétinol). Entreposer les solutions dans une atmosphère inerte, dans l’obscurité, à -20 °C (Sigma-Aldrich, 2016a). |
Vitamine E :
Noms propres : Vitamine E (acétate de dl-alpha-tocophéryle), acétate de dl-a-tocophérol), acétate de la vitamine E, acétate de tocophérol, acétate de l’alpha-tocophérol, acétate de tocophéryle
Numéro CAS : 7695-91-2 (acétate de tocophéryle)
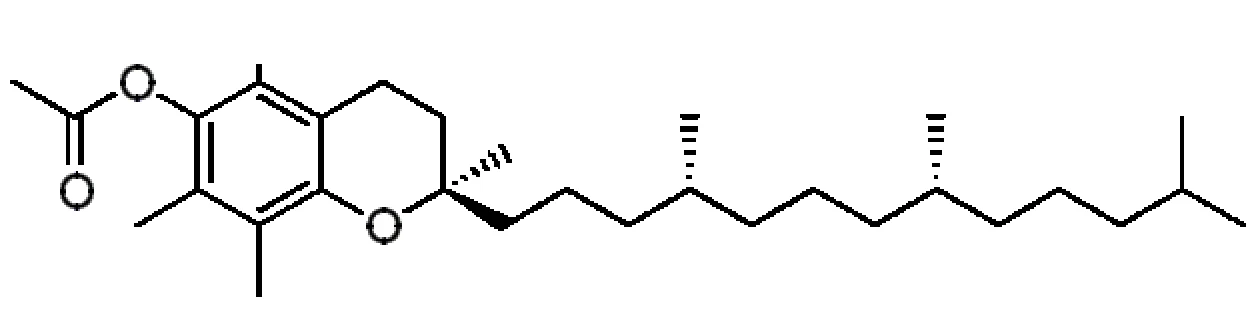
Nom chimique : [(2R)-2,5,7,8-tétraméthyl-2-[(4R,8R)-4,8,12-triméthyltridécyle]-3,4- dihydrochromen-6-yl] acétate
Formule moléculaire : C31H52O3 Masse moléculaire : 472,743 g/mol Formule développée :
| Propriétés physiochimiques : | Liquide visqueux jaune ayant un point d’ébullition supérieur à 200 °C et une densité de 0,96 g/mol. Les tocophérols sont des hydroxychromans succédanés du méthyle qui présentent une chaîne latérale phytylique. En général, ils ont trois carbones asymétriques, ce qui fait huit diastéréomères possibles. Ils sont insolubles dans l’eau et instables en milieu alcalin. Ils sont miscibles avec l’éther, l’acétone, le chloroforme et les huiles végétales. À une température de 2-8 °C, les solutions demeurent actives pendant plusieurs mois. Les solutions devraient être protégées de la lumière (Sigma-Aldrich, 2016b). |
ESSAIS CLINIQUES
Moins de vingt ans après sa découverte il y a cent ans, la vitamine A a été reconnue comme une substance cruciale pour le fonctionnement normal des yeux, la croissance et la survie. Des essais cliniques ont prouvé l’importance de la vitamine A pour la prévention de la xérophtalmie (Sommer, 2014).
Les données des divers essais cliniques ont été examinées en profondeur par des groupes d’experts au fil des ans. L’International Vitamin A Consultative Group (IVACG), l’UNICEF et l’OMS ont élaboré des directives générales pour le diagnostic, le traitement et la prévention des troubles associés à une carence en vitamine A en 1988 dans un document intitulé Supplémentation en vitamine A : utilisation des suppléments dans le traitement et la prévention de la carence en vitamine A et de la xérophtalmie (Reddy, 2002). Une deuxième édition de ce guide a été publiée en 1997. La stratégie d’administration périodique de fortes doses de vitamine A dans les régions où la carence est un problème de santé publique a été officiellement appuyée par l’UNICEF et l’OMS en 1972 lors d’une consultation à Hyderabad, en Inde, consultation après laquelle le comité conjoint entre l’OMS et l’UNICEF a fait un suivi et qui a donné lieu à la formulation d’une recommandation par l’OMS (directive de l’OMS, 2011).
Des renseignements supplémentaires sur les essais cliniques tirés de la littérature sont fournis dans la présente section.
Littérature
La supplémentation en vitamine A à fortes doses pour traiter les signes cliniques de maladie de l’œil ou empêcher la cécité est documentée depuis les années 1960, époque où la prévalence de la xérophtalmie était un problème de santé publique grave. L’OMS a commandité le premier essai pilote avec de fortes doses de vitamine A (300 000 UI) en Jordanie en 1965-1966 (rapport technique de l’OMS, 1976). Au cours de cet essai pilote, des nourrissons âgés entre trois et six mois ont reçu cette forte dose sans effets indésirables. Des essais similaires ont été menés en Inde et en Indonésie avec des doses de 200 000 UI de palmitate de rétinyle dans l’huile administrées par voie orale tous les six mois, ce qui représente le schéma posologique optimal pour réduire l’incidence des lésions oculaires au sein d’une collectivité sans causer de symptômes graves d’hypervitaminose A aiguë (chronique de l’OMS, 1973).
Après le premier essai pilote en Jordanie (1964-1965), des pays comme l’Inde (1970), le Bangladesh (1973) et l’Indonésie (1973) ont commencé à mettre en œuvre des programmes pilotes pour la prévention de la cécité chez les enfants en utilisant une dose de 200 000 UI de vitamine A avec 40 UI de vitamine E dans une solution huileuse administrée par voie orale de façon périodique (tous les quatre à six mois). Cette posologie est devenue la plus répandue pour la prévention de la cécité et est largement approuvée.
Un examen complet de tous les arguments en faveur de la supplémentation en vitamine A (de 100 000 à 200 000 UI) chez les enfants âgés entre 6 mois et 5 ans a été fait, ce qui comprend 43 essais auprès de 215 633 enfants environ. Bien que la mortalité ait été le principal critère d’évaluation dans le cadre de nombreux essais cliniques, la revue et méta-analyse systématiques de la supplémentation en vitamine A a révélé une réduction de 53 % de la prévalence des taches de Bitot au cours de quatre essais (RR = 0,45, IC à 95 % de 0,33-0,61), alors qu’un essai ne faisait état d’aucun effet sur l’incidence des taches de Bitot (RR = 0,93, IC à 95 % de 0,76-1,14). Dans le cadre d’un essai, on a rapporté une réduction de 47 % de l’incidence de cécité nocturne (RR = 0,53, IC à 95 % de 0,28-0,99). Deux essais ont rapporté une réduction de 68 % de la prévalence de la cécité nocturne (RR = 0,32, IC à 95 % de 0,21-0,50). Trois des essais n’ont eu aucun effet combiné sur l’incidence de la xérophtalmie, alors que deux ont permis de constater une réduction de 69 % (RR = 0,31, IC à 95 % de 0,22-0,45) (Imdad et al., 2010).
Dans le cadre d’un essai aléatoire en grappes, on a donné un supplément de vitamine A (rétinol) à un million d’enfants d’âge préscolaire dans le nord de l’Inde (essai DEVTA) tous les six mois pendant cinq ans. Les groupes ont été répartis de façon aléatoire et ont reçu le traitement habituel, de la vitamine A (capsule de rétinol contenant 200 000 UI d’acétate de rétinyle dans l’huile) tous les six mois, 400 mg d’albendazole (comprimé vermifuge) tous les six mois ou les deux (aucun placebo n’a été utilisé). Les résultats de l’essai DEVTA ont révélé un taux de conformité estimatif de 86 % dans le cas du traitement à l’aide de suppléments de rétinol tous les six mois. Chez les 2 581 enfants, la supplémentation en vitamine A a réduit la carence en vitamine A grave (rétinol < 0,35 μmol/l) de moitié (6 % par rapport à 13 %) entre un et cinq mois après le traitement. La prévalence des taches de Bitot a aussi été réduite de moitié, soit de 3,5 à 1,4 %, au sein du groupe traité par rapport au groupe qui n’a pas reçu de supplément en vitamine A (Awasthi, 2013). La majorité des études ont évalué l’effet d’un supplément de vitamine A à forte dose pour l’indication proposée; l’efficacité d’une dose inférieure pour la même indication n’a pas été suffisamment examinée.
PHARMACOLOGIE DÉTAILLÉE
Pharmacologie animale
La vitamine A est essentielle à une bonne croissance et intervient dans de nombreux processus métaboliques. L’acide rétinoïque (messager intracellulaire important pour la différenciation cellulaire) et le rétinal (élément essentiel au pigment visuel) sont deux des principaux métabolites de la vitamine A. La vitamine A joue aussi un rôle actif dans le maintien de la fonction immunitaire. Une étude a révélé que l’administration d’un supplément contenant une forte dose de palmitate de rétinyle chez le rat produit une élévation de l’activité phagocytaire et tumoricide des macrophages péritonéaux, cellules importantes pour la défense immunitaire (Edem, 2009; Moriguchi et al., 1985).
Pharmacocinétique animale
Des études récentes chez le rat ont permis de déterminer que l’absorption du palmitate de rétinol commence principalement dans le tractus intestinal. La vitamine A est transformée en esters du rétinal puis captée par le système lymphatique. De là, la vitamine A est emmagasinée dans le foie en prévision d’une utilisation future. D’après une étude menée chez le rat à l’aide de vitamine A contenant des chylomicrons radiomarqués, la distribution du palmitate de rétinal après huit heures pourrait aussi être observée dans les reins, les poumons, les glandes surrénales et le plasma, les deux tiers de la vitamine A radioactive étant détectés dans le foie (Goodman et al., 1965; D’Ambrosio et al., 2011). Vingt-quatre heures après l’administration, la plus grande partie de la vitamine A radioactive (métabolites hydrosolubles) a été éliminée de l’organisme dans la bile et l’urine (Goodman et al., 1965). On a aussi déterminé que, chez le porcelet, peu importe la dose, les porcelets qui avaient un poids élevé à la naissance (> 1,5 kg) emmagasinaient une plus grande quantité de la supplémentation en vitamine A que ceux qui avaient un faible poids (< 1 kg) lorsque le supplément était administré à la naissance (Heying et al., 2015).
Des méthodes de modélisation mathématique ont commencé récemment à éclairer la cinétique du rétinol au cours de la période de croissance postnatale ainsi que l’effet de la supplémentation en rétinoïdes sur la cinétique du rétinol. La comparaison des paramètres cinétiques des études à l’aide d’indicateurs menées chez le rat néonatal avec les paramètres déterminés précédemment dans les modèles de métabolisme de la vitamine A chez le rat adulte indique des similarités et des différences en ce qui a trait aux taux de transfert relatifs du rétinol plasmatique aux tissus extrahépatiques, ce qui se traduit par des similarités et des différences dans les paramètres cinétiques et les inférences concernant les processus physiologiques. Les similarités entre les modèles néonataux et adultes touchaient la capacité de digestion et d’absorption efficaces de la vitamine A, les caractéristiques d’un système très réceptif, le recyclage considérable du rétinol dans le foie, le plasma et les tissus extrahépatiques ainsi que les taux d’élimination comparables de la vitamine A. Parmi les différences entre les modèles néonataux et adultes, on a noté que, chez les nouveau-nés, la reconstitution du rétinol est plus vite et le recyclage du rétinol est beaucoup plus complet; les tissus extrahépatiques et l’intestin jouent un plus grand rôle dans la capture de la vitamine A contenue dans les chylomicrons, surtout chez le rat nouveau-né traité avec un supplément contenant de la vitamine A. En résumé, la modélisation de la cinétique du rétinol chez le rat nouveau-né a donné un aperçu du métabolisme de la vitamine A dans tout l’organisme au sein de ce groupe d’âge et permet de présumer que la cinétique de la vitamine A chez le rat nouveau-né diffère à bien des égards de la cinétique chez l’adulte, ce qui reflète peut-être une adaptation à la concentration de vitamine A inférieure chez le nouveau-né par rapport à l’adulte (Tan et al., 2015).
Pharmacocinétique humaine
Pour déterminer si la supplémentation en vitamine A entraîne une élévation du taux des composés de l’acide rétinoïque dans le plasma humain, on a donné à six hommes en santé (âgés entre 25 et 32 ans) une dose de 833 UI de vitamine A par kg de poids corporel une fois par jour pendant 20 jours. Les résultats ont révélé une hausse appréciable du taux d’acide rétinoïque trans (deux fois plus élevé), d’acide rétinoïque 13-cis (sept fois plus élevé) et d’acide rétinoïque 4-oxo-13-cis (cinq fois plus élevé) par rapport aux concentrations plasmatiques endogènes de rétinoïde. Des résultats similaires ont été obtenus dans le cadre d’un traitement à l’isotrétinoïne, un médicament tératogène connu (Eckhoff and Nau, 1990a).
La concentration plasmatique de certains rétinoïdes associés à la consommation de vitamine A de sources alimentaires et provenant de suppléments a été évaluée au cours d’études portant sur l’administration de doses uniques et de doses multiples. Durant l’étude portant sur l’administration de doses uniques, 36 femmes adultes (≥ 18 ans) ont reçu un repas contenant une dose d’environ 4 000, 40 000 ou 80 000 UI de vitamine A. Dans le cadre des études portant sur l’administration de doses uniques et de doses multiples, le plasma a été analysé à l’aide d’une méthode de chromatographie liquide haute performance avec détection par rayons ultraviolets. Les concentrations de 4-oxo-trétinoïne étaient inférieures à la limite de quantification du dosage (0,3 ng/ml) dans la majorité des échantillons prélevés. D’après les données recueillies grâce à l’étude portant sur l’administration de doses uniques, une relation linéaire a pu être établie entre la dose et la Cmax ainsi qu’entre la dose et l’ASC dans le cas de l’isotrétinoïne et de la 4-oxo-isotrétinoïne. La Cmax de l’isotrétinoïne était de 0,00016 x dose + 0,7 (r2 = 0,56, P<0,001) et l’ASC était de 0,00498 x dose + 6 (r2 = 0,69, P<0,001). La Cmax de la 4-oxo-isotrétinoïne était de 0,00019 x dose + 0,3 (r2 = 0,54, P<0,001) et l’ASC était de 0,0115 x dose -18 (r2 = 0,55,
P<0,001).
Au cours de l’étude portant sur l’administration de doses multiples, 24 autres femmes adultes ont reçu un supplément de vitamine A en dose quotidienne d’environ 5 000, 10 000 ou 25 000 UI pendant 60 jours. Durant cette étude, l’isotrétinoïne et la 4-oxo-isotrétinoïne avaient atteint des taux stables au 15e jour. De plus, le groupe recevant 5 000 UI de vitamine A présentait une biodisponibilité supérieure aux groupes dont la dose était de 10 000 ou de 25 000 UI. L’ingestion quotidienne de 5 000 UI de vitamine A a entraîné une hausse de l’ASC 24 heures de l’isotrétinoïne (141 + 53 %) par rapport à la valeur de départ. De façon similaire, l’ASC 24 heures de la 4-oxo-isotrétinoïne a augmenté de 171 + 77 % par rapport à la valeur de départ (Chen et al., 1996).
La présence d’acide rétinoïque tout-trans, d’acide rétinoïque 13-cis, d’acide rétinoïque 4-oxo-tout-trans et d’acide rétinoïque 4-oxo-13-cis endogènes ainsi que l’effet d’une dose unique de vitamine A sur les taux d’acide rétinoïque dans le plasma humain ont été étudiés. Les concentrations plasmatiques moyennes des métabolites de vitamine A observées chez 10 hommes volontaires étaient de 1,32 ± 0,46 ng/ml dans le cas de l’acide rétinoïque tout-trans, de 1,63 ± 0,85 ng/ml dans le cas de l’acide rétinoïque 13-cis et de 3,68 ± 0,99 ng/ml dans le cas de l’acide rétinoïque 4-oxo-13-cis. Après une dose unique de vitamine A (833 UI/kg de poids corporel) chez 5 hommes volontaires, la concentration plasmatique moyenne d’acide rétinoïque tout-trans a augmenté à 3,92 ± 1,40 ng/ml, et celle de l’acide rétinoïque 13-cis, à 9,75 ± 2,18 ng/ml. Des concentrations plasmatiques maximales d’acide rétinoïque 4-oxo-13-cis (moyenne de 7,60 ± 1,45 ng/ml) ont été observées 6 heures après l’administration de la dernière dose de l’étude. Les concentrations d’acide rétinoïque 4-oxo-tout-trans étaient faibles ou indécelables (Eckhoff and Nau, 1990b).
Une autre étude s’est penchée sur la pharmacocinétique du palmitate de rétinol chez 10 femmes volontaires en santé âgées entre 22 et 43 ans. Cette étude croisée comprenait une période d’épuration de quatre semaines entre chaque traitement. Les sujets ont reçu 50 et 150 mg de rétinol par voie orale sous forme de supplément, 50 et 150 mg de rétinol sous forme de foie de veau et 3, 9 et 30 mg de rétinol par injection intramusculaire. Le plasma a été analysé à l’aide d’une technique de chromatographie liquide haute performance. Les résultats ont démontré que la concentration plasmatique de palmitate de rétinyle était plus élevée après l’administration de 50 mg de rétinol par voie orale qu’après la consommation de 50 mg de foie de veau frit. Aucun changement notable n’a été observé dans le cas des traitements de 150 mg. En outre, la Cmax et l’ASC d’acide rétinoïque tout-trans étaient 20 fois plus élevées chez le groupe qui prenait le supplément de vitamine A plutôt que le foie. Les autres métabolites (acide rétinoïque 13-cis et acide rétinoïque 4-oxo-13-cis) présentaient des écarts marginaux moins marqués entre la consommation de foie et d’un supplément. Les résultats du traitement intramusculaire de 30 mg de rétinol indiquaient une hausse du palmitate de rétinyle semblable à la hausse observée après l’administration d’une dose par voie orale, mais aucune augmentation des concentrations de métabolites acides (Buss et al., 1994).
TOXICOLOGIE
Toxicité aiguë d’une dose unique
On considère que les doses uniques de rétinoïdes administrées par voie orale ont un potentiel de toxicité aiguë relativement faible. Au cours des études de toxicologie sur les doses orales uniques aiguës chez la souris et le rat, la dose létale médiane du palmitate de vitamine A était 6 060 et 7 910 mg/kg, respectivement. De même, les autres formes de vitamine A ont une dose létale médiane comparable et, en général, il existe peu ou pas de différence entre les espèces pour ce qui est de la toxicité aiguë des rétinoïdes chez la souris et le rat (données résumées dans Kamm, 1982).
Toxicité à doses répétées
Toxicité subchronique
Les résultats d’une étude portant sur la toxicité du palmitate de vitamine A chez le rat à des doses orales répétées (gavage) de 0, de 188 et de 283 mg/kg/jour pendant 16 jours sont résumés par Kamm (1982). Dans cette étude, on a expliqué que l’incidence, l’apparition et la gravité des effets de la vitamine A étaient liées à la dose; des effets semblables ont été observés dans le cadre des études de 14 jours sur l’acétate de vitamine A à des doses similaires pouvant atteindre 300 mg/kg/jour chez le rat et 160 mg/kg/jour chez le chien, ce qui indique que ces formes de vitamine A produisent un spectre d’effets comparables. Les signes cliniques typiques de toxicité observés durant les études comprenaient une réduction de la consommation d’aliments et de la prise de poids, l’érythème, l’alopécie, la modification des muqueuses et la fracture des os longs, caractérisée par la claudication ou une modification de la démarche. Les changements dans les valeurs biologiques sériques comprenaient l’élévation de l’activité des phosphatases alcalines ainsi que de la concentration de triglycérides et, moins souvent, l’élévation de l’activité des transaminases. Les résultats suivants ont été souvent observés lors de l’examen macroscopique : signe de fracture d’un os, foie pâle ou tacheté, poids accru du foie et poids réduit des testicules. L’examen histopathologique révélait en général des signes de modifications osseuses et une spermatogénèse réduite (Kamm, 1982).
Toxicité chronique
Les études de plus longue durée sur la toxicité à doses orales répétées comprennent deux études de 10 mois chez le rat et le chien (données non publiées décrites dans FASEB, 1980 et dans CIR, 1987). Des groupes de 10 rats ont reçu une dose orale par gavage de 10 000 à 50 000 UI de palmitate de rétinyle par kg de poids corporel par jour [niveaux de dose de 0 (témoin), de 5,5, de 13,8 ou de 25,5 mg/kg/jour] 5 jours par semaine (doses). Des groupes de 3 chiens ont reçu une dose orale (capsule) d’environ 1 000 à 25 000 UI de palmitate de rétinyle par kg par jour [niveaux de dose de (témoin), de 0,6, de 2,8 ou de 13,8 mg/kg/jour] 5 jours par semaine. Le niveau de dose élevé chez le chien était à peu près 250 fois plus haut que l’apport recommandé en palmitate de rétinyle chez l’humain (environ 100 UI ou 0,06 mg/kg/jour au moment où l’étude a été menée). Aucun effet indésirable (y compris signe clinique de toxicité, changement hebdomadaire dans le poids corporel ni signe hématologique) n’a été observé chez aucune des espèces. Aucun examen macroscopique ni microscopique des tissus n’a été pratiqué.
Au cours de deux autres études toxicologiques de 10 mois, on a administré du palmitate de vitamine A à des rats par gavage en doses orales de 0,06, de 0,14 ou de 0,28 mg/kg/jour, et des doses de 0, de 0,006, de 0,03 ou de 0,15 mg/kg/jour (en capsule) à des chiens (Kamm, 1982). Les doses étaient des multiples de la dose maximale tolérée chez l’humain, soit
25 000 UI/kg/jour ou environ 0,15 mg/kg/jour au moment où l’étude a été menée. Aucun effet indésirable n’a été rapporté chez le rat ni chez le chien en ce qui a trait à la mortalité, à la croissance ou aux paramètres hématologiques, comme la numérotation des globules rouges totaux, la numérotation des globules blancs et la formule leucocytaire, la concentration de l’hémoglobine ou le temps de prothrombine. Aucun examen macroscopique ni microscopique des tissus n’a été pratiqué.
Autres études toxicologiques
Les effets de la vitamine A ont été analysés dans le cadre d’études approfondies sur des organes et des tissus précis :
- Bien qu’il ait été démontré que des doses répétées de vitamine A entraînent la fragilité osseuse, des recherches supplémentaires ont été faites auprès de rates adultes après l’administration de doses orales de 120 et de 600 UI/g de pastilles de nourriture (10 et 50 fois le niveau de vitamine A du régime témoin, respectivement). Une augmentation atteignant dans certains cas 20 fois le taux sérique normal d’esters du rétinol a confirmé l’apport en vitamine A. Après 12 semaines d’administration, le diamètre des os avait diminué, mais leur densité minérale demeurait inchangée (Lind et al., 2006).
- Lors d’une étude approfondie de l’effet du palmitate de rétinyle sur la fonction cérébrale, des rats d’âge moyen ont reçu des doses orales de 0, de 300, de 600 ou de 3 000 µg d’activité équivalent rétinal par kg par jour (doses humaines équivalentes de 5, de 10 et de 50 µg d’activité équivalent rétinal par kg par jour) pendant 28 jours (Schnorret al., 2015). Ces niveaux de dose étaient similaires aux doses contenues dans les suppléments alimentaires. Les rats qui ont reçu du palmitate de rétinyle avaient un comportement moins explorateur et plus anxieux, mais leur activité locomotrice n’a pas changé. Ces changements étaient associés à des événements prooxydants dans le cerveau et non à l’hépatoxicité.
- L’administration de doses orales (gavage) de 0, de 1 000, de 2 500, de 4 500 ou de 9 000 UI de palmitate de rétinyle par kg par jour à des rats pendant 3 ou 7 jours a entraîné des signes de modification des indicateurs de redox, par exemple la peroxydation du foie, et l’activité de la superoxyde dismutase (SOD) et de la catalase (CAT) (de 1,2 à 1,7 fois plus élevée, selon la période d’administration et le niveau de dose) (de Oliveira et al., 2009). Les niveaux de dose testés étaient à peu près équivalents à 500, à 1 375, à 2 475 et à 4 950 µg/kg/jour.
- Le risque accru d’hépatoxicité a été associé à l’augmentation de l’apport en vitamine A chez les souris qui ont reçu des doses de 0 (témoin) ou de 500 UI/kg/jour par voie intrapéritonéale pendant 2 ou 3 semaines (Ibrahim and Okdah, 2015). Parmi les effets observés, notons la congestion et la dilatation des vaisseaux sanguins, des infiltrations leucocytaires, la vacuolisation cytoplasmique des hépatocytes et la dégénérescence graisseuse, en plus d’une élévation des taux sériques de transaminases hépatiques et de phosphatases alcalines; les changements étaient plus graves après 3 semaines d’administration qu’après 2 semaines.
- Durant une étude de 28 jours sur l’administration de doses orales (gavage) de 0, de 1 000, de 2 500, de 4 500 ou de 9 000 UI/kg/jour chez le rat, l’analyse des tissus cardiaques a révélé une hausse de l’oxydation des lipides et des protéines, une modification de l’activité des SOD et des CAT ainsi qu’une augmentation de la concentration mitochondriale de 3-nitrotyrosine, ce qui pourrait indiquer un stress oxydatif ou nitreux (da Rocha et al., 2010). Les niveaux de dose testés étaient à peu près équivalents à 550, à 1 375, à 2 475 et à 4 950 µg/kg/jour.
- Des souris (âgées de plus de 4 semaines) ont reçu 20 (régime témoin) ou 200 UI de palmitate de rétinyle par g de nourriture (11 ou 110 µg/g de nourriture) dans le cadre d’une étude de 12 mois visant à évaluer l’effet sur le cœur, y compris au niveau tissulaire et subcellulaire (Huk et al., 2013). Les souris ont subi une sténose aortique et une calcification des valves, ce qui pourrait favoriser une maladie cardiaque.
Mutagénicité et cancérogénicité
Le pouvoir mutagène et génotoxique de la vitamine A a été évalué dans le cadre de plusieurs études. La vitamine A n’a montré aucun pouvoir mutagène lors du test de réversion de mutation bactérienne in vitro à des concentrations allant jusqu’à 2,0 mg/plaque (sous forme de rétinal; gamme de concentration complète inconnue) (Kamm, 1982) ni lors de l’essai portant sur des cellules de lymphome de souris L5178Y/Tk +/- [palmitate de rétinyle à 25-100 µg/ml (Mei et al., 2005); rétinol à 5 ou à 10 µg/ml (Mei et al., 2010)]. Le palmitate de rétinyle (20-40 µg/ml) n’a eu aucun effet génotoxique au cours du test in vitro d’anomalie chromosomique dans des cellules d’ovaire de hamsters chinois (Dufour et al., 2009), et le test d’échange de chromatides sœurs sur le rétinol (testé jusqu’à 16 ug/ml) était aussi négatif (Huang et al., 1982). Un certain nombre d’études ont notamment évalué l’effet inhibiteur potentiel de la vitamine A sur la mutagénèse provoquée par d’autres composés (les études préliminaires sont résumées dans CIR, 1987).
Les premiers rapports publiés sur la vitamine A indiquaient qu’il n’existait aucune étude de cancérogénicité (FASEB, 1980; CIR, 1987), et les analyses concurrentes ne démontrent aucun potentiel carcinogène [p. ex. taux de vitamine A généralement reconnu inoffensif (CIR, 1987)].
Toxicologie de la reproduction et du développement
Fertilité et reproduction
Une étude chez le lapin (résumée dans FASEB, 1980) a démontré que la vitamine A à fortes doses a des effets néfastes sur la motilité et la durée de vie des spermatozoïdes (doses uniques de 60 000 à 90 000 UI/kg par voie intramusculaire). Le palmitate de rétinyle (dose orale de 5 000 UI 3 fois par semaine pendant 9 mois, dose équivalente à environ 13 750 µg/kg pour un animal de 200 g) avait un effet inhibiteur sur l’ovulation cyclique de la rate (résumé dans FASEB, 1980).
Tératogénicité
La tératogénicité d’un excès de vitamine A chez les animaux de laboratoire est bien connue et a été mentionnée pour la première fois dans les années 1950 (voir Geelen, 1979), et elle a fait l’objet de nombreuses recherches et études non cliniques et cliniques au cours des décennies subséquentes [FASEB, 1980; Kamm, 1982; CIR, 1987; Hathcock et al., 1990; Ross et al., 2000]. Les effets de la vitamine A et des composés rétinoïdes dérivés sur l’embryon et le fœtus dépendent du stade de gestation, du type de rétinoïde et du niveau de dose (examinés dans Ross et al., 2000). On a décrit un « syndrome de malformation provoquée par les rétinoïdes » caractérisé par des modifications de l’oreille externe, de la région craniofaciale, du cerveau, du thymus et du cœur et observé tant chez l’humain que chez le singe (Hendrickx et al., 2000).
Lors d’une étude préliminaire où des rates gravides étaient soumises à l’ingestion de 35 000 UI de vitamine A par jour (175 000 UI/kg/jour) du 3e au 16e jour de gestation, on a constaté une réduction du nombre de portées à terme et une réduction de la taille des portées. Les petits des mères traitées présentaient un taux d’incidence accru d’anomalies fœtales comme l’exencéphalie, un bec-de-lièvre et(ou) une fente palatine, la brachygnathie et diverses anomalies oculaires (Cohlan, 1953). Des effets tératogènes d’un excès de vitamine A similaires ont été observés chez d’autres espèces animales, notamment la souris, le cobaye, le hamster, le singe et le lapin (examinés dans FASEB, 1980). Au cours d’une étude ultérieure, des rates ont été gavées de palmitate de rétinyle à raison de 3,2, de 32 ou de 128 mg/kg/jour du 6e au 15e jour de gestation (Hayes et al., 1981). La toxicité maternelle, une résorption fœtale accrue et des malformations ont été observées à 128 mg/kg/jour, mais la tératogénicité et l’embryolétalité étaient nulles à 3,2 et à 32 mg/kg/jour. Les fœtus présentaient des malformations de la région craniofaciale. Lors d’une série différente d’études, le palmitate de vitamine A a été évalué à des doses orales de 0, de 5, de 15 et de 50 mg/kg/jour chez la souris (du 6e au 15e jour de gestation), à des doses de 0, de 10, de 30 et de 90 mg/kg/jour chez la rate (du 6e au 15e jour de gestation) ainsi qu’à des doses de 0, de 0,5, de 2 et de 5 mg/kg/jour chez la lapine (du 6e au 18e jour de gestation) (Kamm, 1982). Des doses à effet nul ont été déterminées au cours de ces études (15, 30 et 2 mg/kg/jour chez la souris, la rate et la lapine, respectivement).
Plus récemment, on a évalué le délai d’apparition des effets du palmitate de rétinyle sur la morphogénèse des membres chez la souris en administrant 1 ou 2 doses par injection intrapéritonéale (ip) un jour seulement (le 9e, 10e, 11e ou 12e jour de gestation) (Rezaei et al., 2009). Les injections ip contenant une dose de 10 000 ou de 15 000 UI/kg ont été faites une ou deux fois le jour donné de la gestation, ce qui a fourni des doses de 0, de 15 000, de 20 000 ou de 30 000 UI/kg aux souris gravides. Une résorption embryonnaire s’est produite, et certains embryons présentaient des anomalies des membres aux deux niveaux de dose, le type de malformation dépendant du jour de gestation.
Les effets de la vitamine A sur le développement de l’embryon et du fœtus ont été évalués chez le macaque femelle. On a administré une dose quotidienne de 7 500 UI/kg de poids corporel (2,25 mg/kg) à 80 000 UI/kg (24 mg/kg) de palmitate de vitamine A par voie orale du 16e au 27e jour de gestation. Au sein des deux groupes qui ont reçu les doses les plus élevées (40 000 et 80 000 UI/kg/jour), on a constaté des signes d’hypervitaminose A légère ou grave (érythème, éruption cutanée, épistaxis, rhinorrhée, enflure des paupières, gingivite, lésions aux lèvres et alopécie); des effets sur le fœtus, y compris des malformations et des avortements, ont été observés parmi ces groupes. Le taux d’avortement et de malformation affectant les tissus cibles des rétinoïdes chez l’embryon, dont la région craniofaciale, le cœur et le thymus, augmentait en fonction de la dose. Les résultats ont également révélé une hausse de l’exposition (ASC) aux esters du rétinol et aux acides rétinoïques (acide rétinoïque tout-trans, acide rétinoïque 4-oxo-tout-trans, acide rétinoïque 13-cis, acide rétinoïque 4-oxo-13-cis) liée à la dose. La DSENO et la DMENO sur la formation structurelle étaient de 7 500 UI/kg et de 20 000 UI/kg (6 mg/kg), respectivement. La DSENO de la vitamine A chez le singe (7 500 UI/kg) a été utilisée pour estimer les niveaux sûrs de ce nutriment chez l’humain en appliquant un coefficient de sécurité de 10. D’après ce calcul, les résultats de l’étude indiquaient que les niveaux de vitamine A sûrs pour la femme durant la grossesse seraient de l’ordre de 25 000 à 37 000 UI par jour (Hendrickx et al., 2000).
L’exposition à de fortes doses de vitamine A durant des jours précis de la gestation pourrait avoir des effets à long terme sur l’apprentissage et le comportement des enfants ou sur leur taux de réponse, tel qu’il est étudié dans FASEB (1980).
Études sur le développement périnatal et postnatal, et chez de jeunes animaux
Il a été démontré que la vitamine A réduit le poids du cerveau, le cholestérol libre, la phosphatidyléthanolamine et la synthèse des sulfatides de myéline du Na2SO4 lors d’une étude sur des ratons auxquels on a administré 1 000 UI de vitamine A 4, 6, 8 et 10 jours après la naissance (Joshi et al., 1983).
La supplémentation en vitamine A pendant la gestation et pendant 21 jours durant l’allaitement a entraîné une hausse des marqueurs de dommages oxydatifs dans les tissus du système reproducteur et le plasma des mères (Schnorr et al., 2011a). La vitamine A (sous forme de palmitate de rétinol) a été administrée par gavage en doses de 2 500, de 12 500 ou de 25 000 UI/kg/jour. Le potentiel de réponse antioxydante du foie et des reins était réduit chez les ratons des mères traitées (baisse du taux d’activité de la superoxyde dismutase et de la catalase). On a jugé que ces changements pourraient causer des effets indésirables sur le développement des petits.
De fortes doses de vitamine A (2 500, 12 500 ou 25 000 UI/kg/jour) administrées durant la gestation et pendant 21 jours durant l’allaitement ont augmenté les signes de dommages oxydatifs du striatum et de l’hippocampe chez la mère et les petits (Schnorr et al., 2011b). Des tests de dépaysement menés 5 et 10 jours après la naissance ainsi que des tests en champ libre 19 et 20 jours après la naissance ont permis d’établir un lien entre ces dommages et des changements de comportement chez les petits, par exemple une réduction de certains comportements (nombre de traversées, d’entrées centrales et de cabrements, toilettage).
La supplémentation en vitamine A (fournissant 216 mg de palmitate de rétinol par kg de supplément) chez la mère durant l’allaitement (du jour de l’accouchement et 21 jours par la suite) et chez les ratons après le sevrage a entraîné une modification de la réponse immunitaire à un allergène (ovalbumine) injecté 28 jours après la naissance (Rühlet al., 2007). L’apport en vitamine A a été confirmé par la concentration sérique de rétinol qui était environ 40 fois plus élevée chez les animaux traités que chez ceux qui ont reçu le régime témoin. Par rapport au régime de base, la vitamine A a réduit la population des cellules CD3+, CD4+, CD8+ et B220+ des lymphocytes spléniques et a accru la production d’interleukine 4 ainsi que des anticorps de classe IgE spécifiques de l’ovalbumine, ce qui indique que la sensibilisation aux allergènes est influencée par la teneur en vitamine A de l’alimentation.
L’effet de la vitamine A sur la maturation sexuelle a été étudié chez les jeunes rates en comparant des niveaux adéquats de vitamine A provenant de l’alimentation, un niveau de vitamine A 5,5 fois plus élevé provenant de fruits et de légumes (c.-à-d. 23 750 UI par kg de nourriture) et un niveau de vitamine A 6,2 fois plus élevé sous forme de palmitate de rétinyle (26 790 UI par kg de nourriture) (McDaniel et al, 2007). Les doses ont été administrées aux animaux du 21e au 63e jour suivant la naissance. Le poids corporel n’a pas été affecté. On n’a constaté aucun effet sur l’âge de maturation sexuelle (établie comme étant le début de l’ouverture du vagin) des rates pubères qui ont reçu du palmitate de rétinyle, alors que les rates auxquelles on a administré de fortes doses de vitamine A provenant de fruits et de légumes montraient un retard. Les cycles œstraux (nombre de cycles, longueur, durée des différentes phases) n’ont pas été touchés. Le développement alvéolaire des glandes mammaires présentait des signes d’inhibition par les hauts niveaux de vitamine A, la vitamine A provenant de fruits et de légumes semblant avoir un effet plus marqué que le palmitate de rétinol. Les deux régimes de vitamine A ont réduit la multiplicité des tumeurs aux glandes mammaires causées par une injection unique du carcinogène 1-méthyl-1-nitrosourée le 66e jour.
En résumé, il semble que la dose minimale avec effet nocif observé chez les animaux soit d’environ 30 000 UI/kg/jour pendant une période de 3 à 5 semaines (FASEB, 1980).
RÉFÉRENCES
- 1. Arya. Dans : Imdad A, Herzer K, Mayo-Wilson E, Yakoob MY, Bhutta ZA. Vitamin A Supplementation for Preventing Morbidity and Mortality in Children from 6 Months to 5 Years of Age (analyse). The Cochrane Database of Systematic Reviews. 2010; 2.
- 2. Awasthi S, Peto R, Read S, Clark S, Pande V, Bundy D, et al. Vitamin A Supplementation Every 6 Months with Retinol in 1 million Pre-school Children in North India: DEVTA, A Cluster-randomised trial. Lancet [Internet]. 2013 [cité le 16 mars 2016];381(9876):1469-1477. Disponible à : https://www.ncbi.nlm.nih.gov/pmc/articles/PMC3647148/
- 3. Bahl. Dans : Imdad A, Herzer K, Mayo-Wilson E, Yakoob MY, Bhutta ZA. Vitamin A Supplementation for Preventing Morbidity and Mortality in Children from 6 Months to 5 Years of Age (analyse). The Cochrane Database of Systematic Reviews. 2010; 2.
- 4. Bauernfeind JC. The Safe Use of Vitamin A. International Vitamin A Consultative Group. 1980.
- 5. Bendich et Langseth. Dans : OMS. Adverse Events Following Administration of Vitamin A Supplements [Internet]. Genève : Organisation mondiale de la Santé (OMS); 2016 [cité le 14 mars 2016]. Disponible à : http://www.who.int/immunization/programmes_systems/interventions/Adverse_events_v
- 6.
Bush et Dahmas. Dans : IOM. Food and Nutrition Board. Dietary Reference Intakes for Vitamin A, Vitamin K, Arsenic, Boron, Chromium, Copper, Iodine, Iron, Manganese, Molybdenum, Nickel, Silicon, Vanadium, and Zinc. Washington (DC) :
- Institute of Medicine (IOM); 2001.
- 7. Buss NE, Tembe, EA, Prendergast BD, Renwick AG, George CF. The Teratogenic Metabolites of Vitamin A in Women Following Supplements and Liver. Human and Experimental Toxicology. 1994;13:33-43.
- 8. Chen C, Mistry G, Jensen B, Heizmann P, Timm U, van Brummelen P, Rakhit AK. Pharmacokinetics of Retinoids in Women after Meal Consumption or Vitamin A Supplementation. J Clin Pharmacol; 1996;36:799-808.
- 9. CIR. Final Report on the Safety Assessment of Retinyl Palmitate. Journal of American College of Toxicology. 1987;6(3):279-320.
- 10. Cohlan. Dans : FASEB. Evaluation of Health Aspects of Vitamin A, Vitamin A Acetate, and Vitamin A Palmitate as Food Ingredients. Rapport final. Bethesda : Federation of American Societies for Experimental Biology (FASEB); 1980. Rapport no SCOGS-118. Numéro : FDA 223-75-2004. Ross SA, McCaffery PJ, Drager UC, Muca LM. Retinoids in Embryonal Development. Physiological Reviews. 2000;80(3):1021-1054.
- 11. Combs, Gerald F. The Vitamins. Amsterdam : Elsevier/Academic Press, 2012. Imprimé.
- 12. CPS. Compendium des produits et spécialités pharmaceutiques (CPS), édition 2016. Ottawa : Association des pharmaciens du Canada (APhC); Vitamine A, monographie de l’APhC. Date de révision : Janvier 2014.
- 13. D’Ambrosio DN, Clugston RD, Blaner WS. Vitamin A Metabolism: An update. Nutrient [Internet]. 2011 [cité le 9 mars 2016];3:63-103. Disponible à : http://www.ncbi.nlm.nih.gov/pmc/articles/PMC3042718/
- 14. da Rocha RF, de Oliveira MR, Schonhofen P, Schnorr C, Pizzol FD, Moreira JC. Long- term Vitamin A Supplementation at Therapeutic Doses Induces Mitochondrial Electrons Transfer Chain (METC) Impairment and Increased Mitochondrial Membrane-enriched Fraction (MMEF) 3-nitrotyrosine on Rat Heart. Free Radical Research. 2010;44(5):505-512.
- 15. de Oliveira MR, Oliveira MW, Lorenzi R, da Rocha RF, Moreira JC. Short-term Vitamin A Supplementation at Therapeutic Doses Induces a Pro-oxidative State in the Hepatic Environment and Facilitates Calcium-ion-induced Oxidative Stress in Rat Liver Mitochondria Independently from Permeability Transition Pore Formation. Cell Biol Toxicol. 2009;25:545-560.
- 16. Drug Bank [Internet]. Ottawa : Instituts de recherche en santé du Canada; 2013 [cité le 9 mars 2016]. Vitamin A. Disponible à : http://www.drugbank.ca/drugs/DB00162
- 17. Dufour EK, Whitwell J, Nohynek GJ, Kirkland D, Toutain H. Retinyl Palmitate is Non- genotoxic in Chinese Hamster Ovary Cells in the Dark or after Pre-irradiation or Simultaneous Irradiation with UV light. Mutation Research. 2009;(672):21-26.
- 18. Eckhoff C, Nau H. Vitamin A Supplementation Increases Levels of Retinoic Acid Compounds in Human Plasma: Possible Implications for Teratogenesis. Arch Toxicol. 1990a;64:502-503.
- 19. Eckhoff C, Nau H. Identification and quantification of all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in human plasma. Journal of Lipid Research. 1990b;31:1445-1454.
- 20. Edem DO. Vitamin A: A Review. Asian Journal of Clinical Nutrition. 2009;1(1):65-82.
- 21. EFSA. Scientific Opinion on Dietary Reference Values for Vitamin A. European Food Safety Authority (EFSA) Journal [Internet]. 2015 [cité le 14 mars 2016];13(3):4028. Disponible à : http://www.efsa.europa.eu/sites/default/files/scientific_output/files/main_documents/402
- 22. FAO. Human Vitamin and Mineral Requirements – Chapter 7: Vitamin A [Internet]. Rome : Organisation des Nations Unies pour l’alimentation et l’agriculture (FAO); 2001 [cité le 26 janvier 2016]. Disponible à : http://www.fao.org/docrep/004/Y2809E/y2809e0d.htm
- 23. FASEB. Evaluation of Health Aspects of Vitamin A, Vitamin A Acetate, and Vitamin A Palmitate as Food Ingredients. Rapport final. Bethesda: Federation of American Societies for Experimental Biology (FASEB); 1980. Rapport no SCOGS-118. Numéro : FDA 223-75-2004.
- 24. Florentino RF, Tanchoco CC, Ramos AC, Mendoza TS, Natividad EP, Tangco JB, Sommer A. Tolerance of Preschoolers to Two Dosage Strengths of Vitamin A Preparation. Am J Clin Nutr. 1990;52:694-700.
- 25. Geelen. Dans : CIR. Final Report on the Safety Assessment of Retinyl Palmitate. Journal of American College of Toxicology. 1987;6(3):279-320.
- 26. Goodman DS, Huang HS, Shiratori T. Tissue Distribution and Metabolism of Newly Absorbed Vitamin A in Rat. Journal of Lipid Research. 1965;6:390-396.
- 27. Hathcock et al. Dans : EFSA. Scientific Opinion on Dietary Reference Values for Vitamin A. European Food Safety Authority (EFSA) Journal [Internet]. 2015 [cité le 14 mars 2016];13(3):4028. Disponible à : http://www.efsa.europa.eu/sites/default/files/scientific_output/files/main_documents/402
- 28. Hayes et al. Dans : CIR. Final Report on the Safety Assessment of Retinyl Palmitate. Journal of American College of Toxicology. 1987;6(3):279-320.
- 29.
Hendrickx AG, Peterson P, Hartmann D, Hummler H. Vitamin A Teratogenicity
- and Risk Assessment in the Macaque Retinoid Model. Reproductive Toxicology. 2000;14:311-323.
- 30. Heying EK, Hovel E, Tanumihardjo SA. Healthy Birth Weight Results in Higher Vitamin A Storage in Neonate Piglets Administered High-dose Supplements. Experimental Biology and Medicine. 2015;240:1378-1385.
- 31. Higdon J [Internet]. Corvallis : Linus Pauling Institute; 2000 [mis à jour en janvier 2015; cité le 16 mars 2016]. Vitamin A. Disponible à : http://lpi.oregonstate.edu/mic/vitamins/vitamin-A
- 32. Huang et al. Dans : CIR. Final Report on the Safety Assessment of Retinyl Palmitate. Journal of American College of Toxicology. 1987;6(3):279-320.
- 33. Huk DJ, Hammond HL, Kegechika H, Lincoln J. Increased Dietary Intake of Vitamin A Promotes Aortic Valve Calcification In Vivo. Arterioscler Thromb Vasc Biol. 2013;33:285-293.
- 34. Ibrahim SA, Okdah YA. Hypervitaminosis A Induced Histological, Histochemical and Immunohistochemical Alterations in the Liver of Albino Mice. Research Journal of Pharmaceutical, Biological and Chemical Sciences. 2015;6(1):831-839.
- 35. Imdad A, Herzer K, Mayo-Wilson E, Yakoob MY, Bhutta ZA. Vitamin A Supplementation for Preventing Morbidity and Mortality in Children from 6 Months to 5 Years of Age (analyse). The Cochrane Database of Systematic Reviews. 2010; 2.
- 36. IOM. Food and Nutrition Board. Dietary Reference Intakes for Vitamin A, Vitamin K, Arsenic, Boron, Chromium, Copper, Iodine, Iron, Manganese, Molybdenum, Nickel, Silicon, Vanadium, and Zinc. Washington (DC) : Institute of Medicine (IOM); 2001.
- 37. Joshi et al. Dans : CIR. Final Report on the Safety Assessment of Retinyl Palmitate. Journal of American College of Toxicology. 1987;6(3):279-320.
- 38. Kamm J. Toxicology, Carcinogenicity, and Teratogenicity of Some Orally Administered Retinoids. J Am Acad Dermatol. 1982;6:652-659.
- 39. Lind PM, Johansson S, Rönn M, Melhus H. Subclinical Hypervitaminosis A in Rat: Measurements of Bone Mineral Density (BMD) Do Not Reveal Adverse Skeletal Changes [résumé]. Chem Biol Interact. 2006;159(1):73-80.
- 40. Mayo-Wilson. Vitamin A Supplements for Preventing Mortality, Illness, and Blindness in Children Aged Under 5: Systematic Review and Meta-analysis. BMJ [Internet]. 2011 [cité le 16 mars 2016];343:d5094. Disponible à : http://www.bmj.com/content/bmj/343/bmj.d5094.full.pdf
- 41.
McDaniel SM, O’Neill C, Metz RP, Tarbutton E, Stacewicz-Sapuntzakis M,
- Heimendinger J, et al. Whole-Food Sources of Vitamin A More Effectively Inhibit Female Rat Sexual Maturation, Mammary Gland Development, and Mammary Carcinogenesis than Retinyl Palmitate. J Nutr. 2007;137:1415-1422.
- 42. McLaren DS, Kraemer K. Manual on Vitamin A Deficiency Disorders (VADD). Sight and Life Press, 3e édition, 2012 [cité le 14 mars 2016]. Disponible à : http://www.sightandlife.org/fileadmin/data/Books/vitamin_a_deficiency_disorders_VAD
- 43. Mei N, Hu J, Xia Q, Fu PP, Moore MM, Chen T. Cytotoxicity and Mutagenicity of Retinol with Ultraviolet A Irradiation in Mouse Lymphoma Cells. Toxicology in Vitro. 2010;24:439-444.
- 44. Mei N, Xia Q, Chen L, Moore MM, Fu PP, Chen T. Photomutagenicity of Retinyl Palmitate by Ultraviolet A Irradiation in Mouse Lymphoma Cells. Toxicological Sciences. 2005;88(1):142-149.
- 45. Miller and Hayes. Dans : OMS. Adverse Events Following Administration of Vitamin A Supplements [Internet]. Genève : Organisation mondiale de la Santé (OMS); 2016 [cité le 14 mars 2016]. Disponible à : http://www.who.int/immunization/programmes_systems/interventions/Adverse_events_v
- 46. Moriguchi S, Werner L, Watson R. High Dietary Vitamin A (Retinyl Palmitate) and Cellular Immune Functions in Mice. Immunology. 1986;56:169-177.
- 47. NIH ODS [Internet]. Bethesda : National Institutes of Health Office of Dietary Supplements (NIH ODS); 2016 [cité le 10 mars 2016]. Vitamin A. Disponible à : https://ods.od.nih.gov/factsheets/VitaminA-HealthProfessional/
- 48. NTP. Photococarcinogenesis Study of Retinoic Acid and Retinyl Palmitate in SKH-1 Mice. Rapport technique. Caroline du Nord : National Toxicology Program (NTP); 2012. Rapport no NTP TR 568. No de publication NIH : 12-5910.
- 49. Nutri-Facts [Internet]. Bâle : DSM Nutritional Products Europe AG; 2015 [cité le 11 mars 2016]. Vitamin A. Disponible à : http://www.nutri-facts.org/eng/vitamins/vitamin-a- .retinol/at-a-glance/
- 50. Olson. Dans : McLaren DS, Kraemer K. Manual on Vitamin A Deficiency Disorders (VADD). Sight and Life Press, 3e édition, 2012.
- 51. Parfitt. Dans : OMS. Adverse Events Following Administration of Vitamin A Supplements [Internet]. Genève : Organisation mondiale de la Santé (OMS); 2016 [cité le 14 mars 2016]. Disponible à : http://www.who.int/immunization/programmes_systems/interventions/Adverse_events_v
- 52. PubChem [Internet]. Bethesda : National Center for Biotechnology Information, 2016 [cité le 15 mars 2016]. Retinyl Palmitate. Disponible à : https://pubchem.ncbi.nlm.nih.gov/compound/5280531#section=Information-Sources
- 53. Reddy V. History of the International Vitamin A Consultative Group 1975–2000. J Nutr. 2002;132:2852S–2856S.
- 54. Rezaei N, Soteh MB, Rahimi F. Effects of Limited Doses of Retinyl Palmitate at the Critical Time of Limb Morphogenesis in Mouse Embryos. Indian Journal of Experimental Biology. 2009;47:949-954.
- 55.
Ross CA. Dans : Coates PM, Betz JM, Blackman MR, Cragg GM, Levine M, Moss J et al. Encyclopedia of Dietary Supplements 2e éd. Londres et New York : Informa Healthcare; 2010:778-791. Disponible à :
http://www.curezone.org/upload/PDF/zlatin/Encyclopedia_of_Dietary_Supplements_2nd
- 56. Ross SA, McCaffery PJ, Drager UC, Muca LM. Retinoids in Embryonal Development. Physiological Reviews. 2000;80(3):1021-1054.
- 57. Rothman KJ, Moore LL, Singer MR, Nguyen DT, Mannino S, Milunsky A. Teratogenicity of High Vitamin A Intake. N Engl J Med. 1995;333:1369-1373.
- 58. Rühl R, Hanel A, Garcia AL, Dahten A, Herz U, Schweigert FJ, et al. Role of Vitamin A Elimination or Supplementation Diets during Postnatal Development on the Allergic Sensitisation in Mice. Mol Nutr & Food Res. 2007;51:1173-1181.
- 59. SCF. Opinion of the Scientific Committee on Food on the Tolerable Upper Intake Level of Preformed Vitamin A (retinol and retinyl esters) [Internet]. Bruxelles : Comité scientifique de l’alimentation humaine (SCF); 2002 [cité le 14 mars 2016]. Disponible à : http://ec.europa.eu/food/fs/sc/scf/out145_en.pdf
- 60. Schnorr CE, Bittencourt L, Petiz LL, Gelain DP, Zeidan-Chilia F, Moreira J. Chronic Retinyl Palmitate Supplementation to Middle-aged Wistar Rats Disrupts the Brain Redox Homeostasis and Induces Changes in Emotional Behavior. Mol Nutr & Food Res. 2015;59:979–990.
- 61. Schnorr CE, Morrone MD, Simoes-Pires A, da Rocha RF, Behr GA, Moreira JC. Vitamin A Supplementation in Rats under Pregnancy and Nursing induces Behavioral Changes and Oxidative Stress upon Striatum and Hippocampus of Dams and their Offspring. Brain Research. 2011b;1369:60-73.
- 62. Schnorr CE, Morrone MD, Weber MH, Lorenzi R, Behr GA, Moreira JC. The Effects of Vitamin A Supplementation to Rats during Gestation and Lactation upon Redox Parameters: Increased Oxidative Stress and Redox Modulation in Mothers and their Offspring. Food and Chemical Toxicology. 2011a;49:2645-2654.
- 63. Sigma-Aldrich [Internet]. St. Louis : Sigma-Aldrich Co. LLC. 2016a [cité le 15 mars 2016]. All Trans Retinol Palmitate. Disponible à : https://www.sigmaaldrich.com/content/dam/sigma-
- 64. Sigma-Aldrich [Internet]. St. Louis : Sigma-Aldrich Co. LLC. 2016b [cité le 15 mars 2016]. DL-α-Tocopherol acetate. Disponible à : https://www.sigmaaldrich.com/content/dam/sigma-
- 65. Sinha. Dans : Florentino RF, Tanchoco CC, Ramos AC, Mendoza TS, Natividad EP, Tangco JB, Sommer A. Tolerance of Preschoolers to Two Dosage Strengths of Vitamin A Preparation. Am J Clin Nutr. 1990;52:694-700.
- 66.
Sommer A. Preventing Blindness and Saving Lives: The Centenary of Vitamin A
[résumé]. JAMA Ophthalmol [Internet]. 2014 [cité le 16 mars 2016];132(1):115-117. Disponible à : http://www.ncbi.nlm.nih.gov/pubmed/24407830
- 67. Stabell. Dans : Imdad A, Herzer K, Mayo-Wilson E, Yakoob MY, Bhutta ZA. Vitamin A Supplementation for Preventing Morbidity and Mortality in Children from 6 Months to 5 Years of Age (analyse). The Cochrane Database of Systematic Reviews. 2010; 2.
- 68. Tachibana K, Sone S, Tsubura E, Kishino. Stimulatory Effect of Vitamin A on Tumoricidal Activity of Rat Alveolar Macrophages. Br J Cancer. 1984;49:343-348.
- 69. Tan L, Green MH, Ross AC. Vitamin A Kinetics in Neonatal Rats vs. Adult Rats: Comparisons from Model-Based Compartmental Analysis. J Nutr. 2015;145:403-410.
- 70. Tapan B, Donaldson D. Intestinal absorption in health and disease: micronutrients. Best Practice and Research Clinical Gastroenterology. 2003;17(6):957-979.
- 71. West KP, Sommer A. Delivery of Oral Doses of Vitamin A to Prevent Vitamin A Deficiency and Nutritional Blindness: A State-of-the-Art Review - Nutrition Policy Discussion Paper No. 2 [Internet]. Suisse : Système des Nations Unies (SNU); 1987 [cité le 14 mars 2016]. Disponible à : http://www.unscn.org/layout/modules/resources/files/Policy_paper_No_2.pdf
- 72. Chronique de l’OMS. Dans : OMS. Carence en vitamine A et xérophtalmie. Rapport d’une réunion mixte OMS/USAID. Rapport technique. Genève : Organisation mondiale de la Santé (OMS) et Agence américaine pour le développement international (USAID); 1976. Rapport no 590. Disponible à : http://apps.who.int/iris/bitstream/10665/38816/1/WHO_TRS_590_fre.pdf
- 73.
OMS. Adverse Events Following Administration of Vitamin A Supplements [Internet]. Genève : Organisation mondiale de la Santé (OMS); 2016 [cité le 14 mars 2016]. Disponible à :
- http://www.who.int/immunization/programmes_systems/interventions/Adverse_events_v
- 74. OMS. Global Prevalence of Vitamin A Deficiency in Populations at Risk 1995-2005 [Internet]. Genève : Organisation mondiale de la Santé (OMS); 2009 [cité le 14 mars 2016]. Disponible à : http://apps.who.int/iris/bitstream/10665/44110/1/9789241598019_eng.pdf
- 75. OMS. Directive : Supplémentation en vitamine A chez les nourrissons et les enfants de 6 à 59 mois [Internet]. Genève : Organisation mondiale de la Santé (OMS); 2011 [cité le 14 mars 2016]. Disponible à : http://apps.who.int/iris/bitstream/10665/44718/1/9789242501766_fre.pdf
- 76. OMS. Carence en vitamine A et xérophtalmie. Rapport d’une réunion mixte OMS/USAID. Rapport technique. Genève : Organisation mondiale de la Santé (OMS) et Agence américaine pour le développement international (USAID); 1976. Rapport no 590. Disponible à : http://apps.who.int/iris/bitstream/10665/38816/1/WHO_TRS_590_fre.pdf